
新闻中心

胰岛β细胞能够根据机体的营养状态精准调节胰岛素分泌,这是维持血糖稳态的关键[1]。葡萄糖是诱导胰岛素释放的主要营养信号,精氨酸、谷氨酰胺和亮氨酸等氨基酸则可通过膜去极化、代谢供能或信号通路激活等方式增强葡萄糖刺激的胰岛素分泌(glucose-stimulated insulin secretion,GSIS)[2-5]。然而,相较于细胞如何感知“氨基酸充足”,β细胞如何识别氨基酸缺乏,并据此调整胰岛素释放,仍缺乏清晰的分子解释。
蛋白质S-棕榈酰化是一种动态、可逆的脂质翻译后修饰[6]。该过程由含有DHHC基序的棕榈酰转移酶催化,可调控蛋白质的稳定性、膜定位及胞内转运[7-12]。棕榈酰化所使用的棕榈酰辅酶A本身来源于能量代谢,但营养状态是否以及如何直接调控棕榈酰转移酶,长期以来并不清楚。
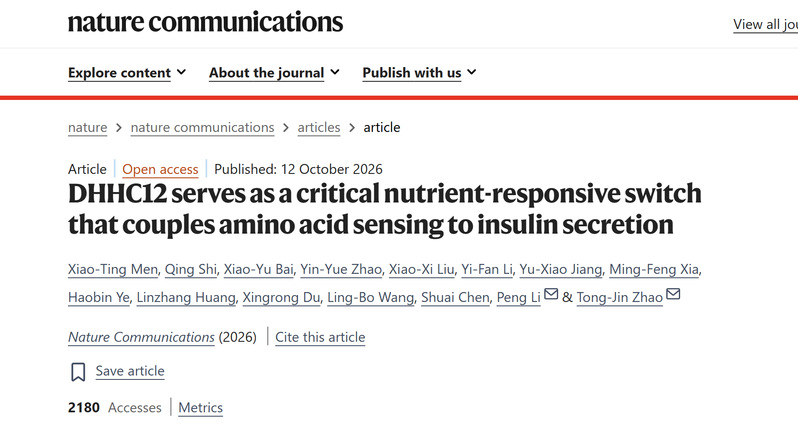
近日,赵同金/李蓬课题组在Nature Communications发表题为“DHHC12 serves as a critical nutrient-responsive switch that couples amino acid sensing to insulin secretion”的研究论文。该研究发现,氨基酸缺乏激活GCN2,促使其磷酸化COPA并启动CRL4–COPA E3泛素连接酶复合物,进而介导DHHC12泛素化降解,降低SYT7棕榈酰化并抑制胰岛素胞吐,揭示了一条连接氨基酸感知与胰岛素分泌的GCN2–CRL4–COPA–DHHC12–SYT7调控通路。
通过禁食小鼠组织的棕榈酰化蛋白质组分析发现,棕榈酰转移酶DHHC12在禁食状态下显著减少。进一步研究表明,氨基酸缺乏可激活营养感受激酶GCN2。GCN2直接磷酸化COPA的Thr777位点,使COPA招募DHHC12进入CRL4 E3泛素连接酶复合物,促进DHHC12在Cys127和Cys133位点发生泛素化并被蛋白酶体降解。
在功能上,全身或胰岛β细胞特异性敲除Dhhc12,均会导致小鼠葡萄糖耐量受损和葡萄糖刺激的胰岛素分泌下降,但不明显影响胰岛素敏感性及胰岛素合成。机制研究进一步鉴定出胰岛素分泌颗粒蛋白SYT7是DHHC12的关键底物。DHHC12通过棕榈酰化SYT7,促进其向质膜转运,从而保障胰岛素颗粒正常胞吐;DHHC12缺失或SYT7棕榈酰化位点突变,均会抑制这一过程。
研究还发现了两个与空腹血糖相关的人类DHHC12变异:L196P突变体能够逃避降解、增强胰岛素分泌,并与较低空腹血糖相关;N238I突变体则持续被降解、抑制胰岛素分泌,并与较高空腹血糖相关。
综上,该研究揭示了氨基酸缺乏如何通过GCN2–COPA信号触发DHHC12降解,进而降低SYT7棕榈酰化并抑制胰岛素胞吐,为理解营养感知、蛋白质脂质修饰与血糖稳态之间的联系提供了新的分子框架。
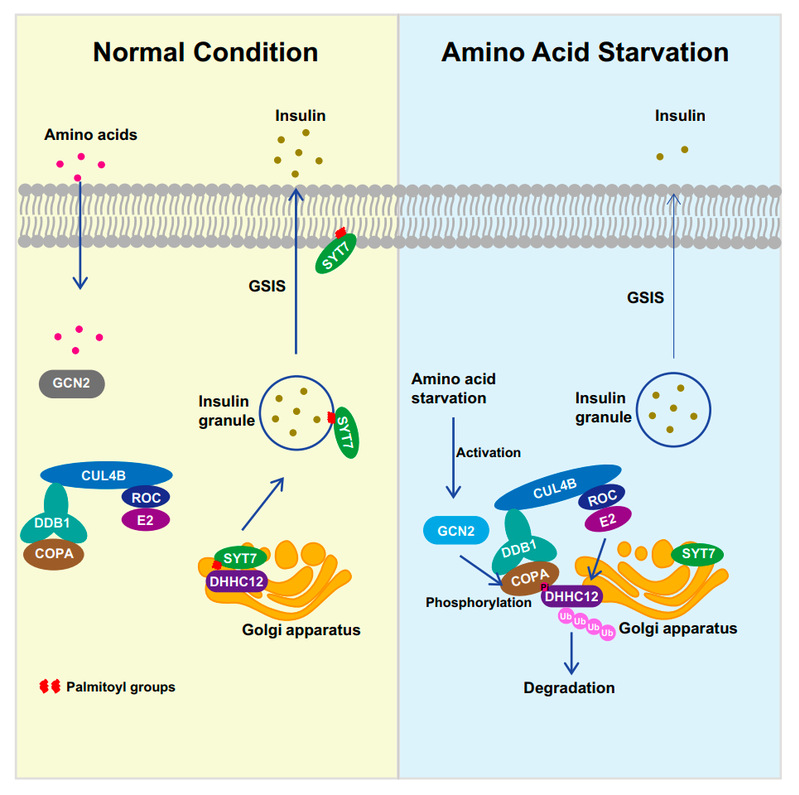
图1:氨基酸充足时,DHHC12对SYT7进行棕榈酰化修饰,并将其转运到胰岛素分泌颗粒,使该分泌系统做好葡萄糖刺激胰岛素分泌的准备。氨基酸匮乏时,GCN2发生活化,对COPA的Thr777位点进行磷酸化。该修饰促进DHHC12招募至CRL4‑COPA E3泛素连接酶复合物,进而使得DHHC12在Cys127与Cys133位点发生泛素化并降解。同时,DHHC12减少会使SYT7无法发生棕榈酰化,最终导致葡萄糖刺激的胰岛素分泌减少。
复旦大学代谢与整合生物学研究院博士研究生门晓婷、青年副研究员史晴、硕士研究生白晓羽和博士后赵银月为共同第一作者,赵同金教授和李蓬教授为共同通讯作者。
原文链接:
https://doi.org/10.1038/s41467-026-78642-2
参考文献:
1.Campbell JE, Newgard CB. Mechanisms controlling pancreatic islet cell function in insulin secretion. Nat Rev Mol Cell Biol. 2021;22(2):142–58.
2.Bolea S, Pertusa JA, Martin F, Sanchez-Andres JV, Soria B. Regulation of pancreatic beta-cell electrical activity and insulin release by physiological amino acid concentrations. Pflugers Arch. 1997;433(6):699–704.
3.Maechler P, Wollheim CB. Mitochondrial glutamate acts as a messenger in glucose-induced insulin exocytosis. Nature. 1999;402(6762):685–9.
4.Smith PA, Sakura H, Coles B, Gummerson N, Proks P, Ashcroft FM. Electrogenic arginine transport mediates stimulus-secretion coupling in mouse pancreatic beta-cells. J Physiol. 1997;499 ( Pt 3)(Pt 3):625–35.
5.Yang J, Dolinger M, Ritaccio G, Mazurkiewicz J, Conti D, Zhu X, et al. Leucine stimulates insulin secretion via down-regulation of surface expression of adrenergic alpha2A receptor through the mTOR (mammalian target of rapamycin) pathway: implication in new-onset diabetes in renal transplantation. J Biol Chem. 2012;287(29):24795–806.
6.Resh MD. Palmitoylation of ligands, receptors, and intracellular signaling molecules. Sci STKE. 2006;2006(359):re14.
7.Korycka J, Lach A, Heger E, Boguslawska DM, Wolny M, Toporkiewicz M, et al. Human DHHC proteins: a spotlight on the hidden player of palmitoylation. Eur J Cell Biol. 2012;91(2):107–17.
8.Hao JW, Wang J, Guo H, Zhao YY, Sun HH, Li YF, et al. CD36 facilitates fatty acid uptake by dynamic palmitoylation-regulated endocytosis. Nat Commun. 2020;11(1):4765.
9.Wang J, Li DL, Zheng LF, Ren S, Huang ZQ, Tao Y, et al. Dynamic palmitoylation of STX11 controls injury-induced fatty acid uptake to promote muscle regeneration. Dev Cell. 2024;59(3):384–99 e5.
10.Fukata Y, Fukata M. Protein palmitoylation in neuronal development and synaptic plasticity. Nat Rev Neurosci. 2010;11(3):161–75.
11.Ko PJ, Dixon SJ. Protein palmitoylation and cancer. EMBO Rep. 2018;19(10).
12.Du K, Murakami S, Sun Y, Kilpatrick CL, Luscher B. DHHC7 Palmitoylates Glucose Transporter 4 (Glut4) and Regulates Glut4 Membrane Translocation. J Biol Chem. 2017;292(7):2979–91.
复旦大学 代谢与整合生物学研究院 版权所有
Copyright@2018fudan.edu.cn All rights reserved.
上海市杨浦区淞沪路2005号。邮编:200438。电话:31242078,31242079
 复旦大学网上办事服务大厅
 复旦大学实验室安全教育与管理平台